

|


|
|||
 |
 |
|||
|---|---|---|---|---|
| Распечатать |
Оптимизация структуры химерного фермента на основе ксиланазы Bacillus sp. 41 M-1 и целлюлазы Hypocrea jecorina VTT-D-80133: влияние линкерных последовательностей на его растворимость и агрегационную способность

УДК 619:577.112:577.151:636.087.7
10.33861/2071-8020-2026-4-28-32
Оригинальное эмпирическое исследование
Мухаммадиев Риш. С., Валиуллин Л.Р. Федеральное государственное бюджетное научное учреждение «Всероссийский
научно-исследовательский институт фитопатологии», Московская область / Федеральное государственное
бюджетное научное учреждение «Федеральный центр токсикологической, радиационной
и биологической безопасности», Республика Татарстан, г. Казань
Мухаммадиев Рин. С., Хусаинова Г. И., Каримуллина И.Г., Сорокина Д. А., Романова А. Н., Ямалова Г. Р. Федеральное государственное бюджетное
научное учреждение «Федеральный центр токсикологической, радиационной и биологической безопасности», Республика Татарстан, г. Казань
Аннотация. В настоящем in silico исследовании проведена оценка влияния различных типов линкеров на показатели растворимости, агрегации и структурной стабильности спроектированных вариантов химерного фермента на основе ксиланазы Bacillus sp. 41M-1 и целлюлазы Hypocrea jecorina VTT-D-80133. Установлено, что по сравнению с остальными конструкциями, вариант фермента, содержащий в своем составе последовательность (EAAAK)3, обладал наибольшей величиной радиуса гирации (42,54 A), а также наименьшими значениями общего индекса агрегации (-324,49) и собственного числа (2,22e-06). У конструкций на основе линкеров (GGGGS)3 и G5(EAAAK)G5 отмечали сравнительно высокие значения показателя растворимости (соответственно 0,45 и 0,44). Помимо этого, оба указанных варианта химерного фермента имели схожие величины общего индекса агрегации (соответственно -291,19 и -307,56), которые были выше в 1,02-1,10 раза, чем у конструкций на основе линкеров (PAPAP)3 и (TP)7T. У последних наблюдали наиболее низкие величины радиуса гирации (соответственно 36,39 и 36,54 A). Только вариант химерного фермента, включающий последовательность (GGGGS)3, представлял интерес для последующей его экспрессии в бактериальной или дрожжевой системе. Данные, полученные в настоящей работе, с высокой вероятностью свидетельствуют о структурной стабильности отобранной конструкции в отношении образования неспецифических белковых комплексов и ее доступности для растворителя. Дальнейшие in silico, in vitro и in vivo исследования открывают перспективы применения разрабатываемой гидролазы, содержащего ферменты разного происхождения, в качестве кормовой добавки в промышленном птицеводстве.
Ключевые слова: химерный фермент, ксиланаза, целлюлаза, Bacillus sp. 41M-1, Hypocrea jecorina VTT-D-80133, линкерные последовательности, растворимость, агрегационная способность, in silico исследования, птицеводство.
Выращиваемые в современном промышленном птицеводстве высокопродуктивные кроссы птиц требуют сбалансированного кормления с оптимальным уровнем аминокислот и обменной энергии, необходимых для реализации заложенного их генетического потенциала [1]. При этом, вопреки существенному повышению интенсивности роста и сокращению срока, который необходим для набора заданной живой массы, пищеварительная система птицы, сохраняя свои эволюционные особенности, по своему строению по-прежнему соответствует таковому ее диких предков [2].
Отбор сельскохозяйственной птицы осуществляется, как правило, по зоотехническим показателям, а именно по приросту мышечной ткани, повышению яйценоскости, улучшению конверсии корма и репродуктивных качеств [3]. В этом плане применение кормовых гидролаз может способствовать обеспечению реализации наследственного потенциала указанных животных, усиливая каталитические функции собственных секретируемых их организмом ферментов (протеаза, альфа-амилаза и липаза) [4].
В тоже время наиболее приоритетным видом зерна для кормления сельскохозяйственной птицы выступает кукуруза [5]. Однако последняя отличается дороговизной, вследствие чего злаковая часть комбикорма формируется преимущественно из пшеницы, ячменя, овса или ржи. Недостаток этих зерновых культур – наличие в их составе антипитательных некрахмалистых полисахаридов (НПС), трудноусвояемых организмом птицы и оказывающих негативное влияние на ее пищеварение [4]. Последнее связано с тем, что НПС, препятствуя доступ пищеварительных энзимов к содержимому клеток, снижают биодоступность корма [2]. Они путем связывания воды в просвете тонкого кишечника способны образовывать в нем вязкие растворы [6]. Следствием этого процесса является снижение переваримости компонентов рациона птицы и, соответственно, повышение смертности поголовья, вызванное активным развитием патогенной микробиоты [7].
Использование гидролитических ферментов, призванных нейтрализовать антипитательные факторы и повысить переваримость питательных веществ корма, – одно из динамично развивающихся направлений в современном кормлении сельскохозяйственной птицы [8]. В состав рационов птиц, как правило, вводят такие монопрепараты, как фитаза, амилаза, глюканаза, ксиланаза, протеаза, и некоторые другие [4]. Для усиления их синергетического действия разрабатывают мультиэнзимные комплексы, включающие в себя разные по механизму действия ферменты [9]. Тем не менее, их эффективность неодинакова, поскольку она напрямую зависит от включенных в данные комплексы ферментов и состава скармливаемого животному рациона. В этом плане особый интерес вызывают бифункциональные комплексы на основе гидролаз разного происхождения [10]. Они, будучи полученными из микробных источников, должны проявлять достаточно высокую активность для гидролиза НПС в широком диапазоне условий кишечника птицы.
Ранее нами была предложена конструкция химерного фермента на основе ксиланазы Bacillus sp. 41M-1 и целлюлазы Hypocrea jecorina VTT-D-80133 обладающая потенциалом применения в промышленном птицеводстве для нейтрализации анти-питательных факторов, и позволяющая повысить переваримость компонентов корма птицы. Однако разрабатываемая конструкция требовала дальнейшей оптимизации, предполагающей определение растворимости и ее конформационной стабильности.
Цель исследования – оптимизация структуры химерного фермента на основе ксиланазы Bacillus sp. 41M-1 и целлюлазы Hypocrea jecorina VTT-D-80133: влияние линкерных последовательностей на его растворимость и агрегационную способность.
Материалы и методы исследования. Растворимость и агрегационную способность исследуемых вариантов конструкции оценивали, используя спроектированный нами химерный фермент на основе ксиланазы (семейство 11 гликозил-гидролаз) штамма Bacillus sp. 41M-1 и целлюлазы (семейство 7 гликозил-гидролаз) штамма Hypocrea jecorina VTT-D-80133.
Аминокислотные последовательности каталитических доменов ферментов получали из базы данных UniProt (для ксиланазы – UniProt ID: Q9RC94, целлюлазы – UniProt ID: P07981) и применяли для дизайна пяти вариантов химерной конструкции, различающихся составом линкеров: жестких (EAAAK)3 и (PAPAP)3, гибкого (GGGGS)3, полужесткого (TP)7T и комбинированного G5(EAAAK)G5.
Конструирование химерного фермента осуществляли соединением С-конца бактериальной ксиланазы с N-концом грибной целлюлазы через указанные типы линкерных последовательностей.
На первом этапе для оптимизации структуры химерного фермента строили трехмерные модели различных вариантов конструкции с помощью нейросетевого алгоритма AlphaFold2 (Google DeepMind, Великобритания), находящегося на платформе ColabFold v1.6.1 [11]. Файлы в формате PDB, представляющие собой расчетные модели, импортировали в программу UCSF ChimeraX 1.11.1 (University of California, США) [12] для их визуализации и проведения дальнейшего in silico изучения.
Предложенные варианты химерной конструкции оценивали на вероятность их растворимости сервером Protein-Sol (University of Manchester, Великобритания) [13]. Для прогнозирования данного физико-химического свойства разрабатываемого фермента применяли его первичную аминокислотную последовательность, содержащую различные типы линкеров. Величину показателя Psol, рассчитываемую сервером как отклонение от среднего значения растворимости белков бактерии E. coli, использовали для оценки гетерологичной экспрессии исследуемых конструкций, считая значения выше 0,45 предсказанием их способности к растворению. Дополнительно учитывали такие свойства вариантов химерного фермента, как заряд, гидропатия и содержание аминокислотных остатков, способствующих их сворачиванию.
Оценку возможности вариантов химерного фермента, содержащих различные типы линкеров, к образованию агрегатов и доступности их гидрофобных участков растворителю проводили алгоритмом Aggrescan3D (A3D) (University of Warsaw, Польша; Universitat Autonoma de Barcelona, Испания) [14]. При этом использовали полученные вышеуказанным подходом файлы трехмерных моделей в формате PDB. Радиус сферы влияния соседних аминокислотных остатков устанавливали равным 10 A. Величину общего индекса агрегации (A3D Total score), рассчитываемая сервером как интегральная сумма потенциалов агрегации всех аминокислотных остатков на поверхности белка, использовали для оценки общей склонности предложенных вариантов конструкции к формированию конгломератов, считая более низкие значения предсказанием их относительно высокой структурной стабильности. Наличие в разрабатываемом химерном ферменте зон, характеризующихся наибольшей гидрофобностью и склонностью к агрегации, устанавливали с помощью индекса «горячей точки» (Max Score). Превышение его значений выше 0 интерпретировали как признак начала процесса образования нерастворимых комплексов. Визуализацию таких участков проводили указанной выше программой окрашиванием поверхности химерного фермента градиентом – от синего (стабильные участки) до красного (участки высокого риска) цветов.
На следующем этапе in silico изучения проводили оценку влияния линкерных последовательностей на конформационную стабильность предложенных вариантов химерного фермента методом анализа нормальных мод (NMA). Для этого применяли сервер iMODS (Rocasolano Physical Chemistry Institute, Испания) [15]. Основным показателем жесткости, которую рассчитывал указанный сервер, служило собственное число (Eigenvalue), отражающее необходимую для деформации структуры энергию. Более высокие значения данного показателя считали подтверждением стабильности разрабатываемого химерного фермента.
Количественное определение компактности спроектированных вариантов химерной конструкции и пространственной их организации осуществляли путем расчёта программой UCSF ChimeraX 1.11.1 радиуса гирации (Rg), определяемого как среднеквадратичное расстояние от центра масс молекулы до её атомов [16].
Для уточнения полученных данных о растворимости и агрегационной способности отобранного варианта химерного фермента по характеру окрашивания его поверхности изучали распределение электростатического потенциала и наличие участков, потенциально способных формировать неспецифические комплексы, в выше указанной программе.
Определение возможной температуры плавления (Tm) и термической стабильности сконструированных вариантов химерной гидролазы осуществляли, используя сервер DeepSTABp (Rheinland-Pfalzische Technische Universitat Kaiserslautern-Landau, Германия).
Результаты исследований и их обсуждение. Ранее проведено изучение пространственной организации спроектированных нами вариантов химерного фермента, которые содержат различные по составу типы линкерной последовательности, в программе AlphaFold2, показавшее достаточно высокую достоверность их моделирования (pLDDT: 93,60-93,90; pTM: 0,65). При этом, обладая схожими физико-химическими свойствами, исследуемые конструкции показали различную ориентацию доменов и изменение расстояния между нуклеофилами в зависимости от типа примененного в исследовании спейсера.
В настоящем исследовании изучено влияние указанных линкеров на основные биоинформатические показатели растворимости, агрегации и структурной стабильности предложенных химерных конструкций до этапа их гетерологичной экспрессии. Для систематизации данных, полученных с помощью биоинфор-матических программ, и выявления взаимосвязей между типом линкера и свойствами разрабатываемого фермента проводили иерархическую кластеризацию анализируемых параметров.
Исходя из сходства расчетных показателей, исследуемые варианты химерных ферментов были распределены по двум кластерам (рисунок 1).
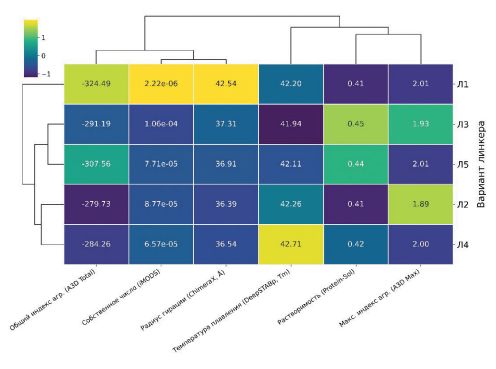
Рис. 1. Иерархическое кластерное in silico изучение влияния типа линкера на структурные и физико-химические свойства разрабатываемого химерного фермента
В первый кластер вошел вариант конструкции на основе линкера (EAAAK)3. Последний характеризовался относительно высокой величиной радиуса гирации (42,54 A), а также низкими значениями общего индекса агрегации (-324,49) и собственного числа (2,22e-06). Скорее всего, по сравнению с остальными предложенными конструкциями, структура данного химерного фермента обладает наибольшей податливостью к низкочастотным деформациям (подвижностью ферментативных доменов друг относительно друга) [15], при этом использование жесткого линкера обеспечивает максимальную пространственную разобщенность его доменов – бактериальной ксиланазы и грибной целлюлазы.
Остальные химерные конструкции представляли второй кластер, внутри которого выделяли также два подкластера согласно их приоритетным свойствам. У конструкций, содержащих в своем составе линкерные последовательности (GGGGS)3 и G5(EAAAK) G5, отмечали сравнительно высокие значения показателя растворимости (соответственно 0,45 и 0,44). Помимо этого, оба указанных варианта химерного фермента имели схожие величины общего индекса агрегации (соответственно -291,19 и -307,56), которые были выше в 1,02-1,10 раза, чем у конструкций на основе линкеров (PAPAP)3 и (TP)7T, вошедших в отдельный подклас-тер. У последних вариантов, в отличие от конструкций первого подкластера, наблюдали наиболее низкие величины радиуса гирации (соответственно 36,39 и 36,54 A). Предложенные нами конструкции первого подкластера, вероятно, характеризуются относительно высокой растворимостью [13], второго – термодинамической стабильностью и компактностью [17].
Среди предложенных конструкций особо выделялся химерный фермент, С-концевой домен бактериальной ксиланазы которого соединен с N-концом грибной целлюлазы при помощи гибкой последовательности (GGGGS)3. Согласно визуальной пространственной оценке данной конструкции (рисунок 2А) нуклеофилы гидролаз (ксиланазы и целлюлазы) пространственно разобщены между собой, а домены не перекрывают доступ к ним, свидетельствуя о высокой вероятности функционально активного состояния обоих каталитических центров, необходимых для эффективного гидролиза субстрата кормов сельскохозяйственной птицы.
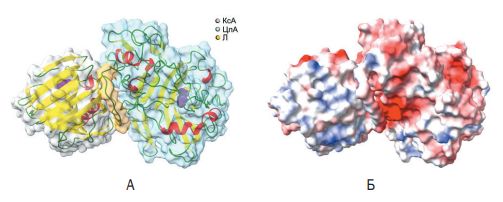
Рис. 2. Структурные особенности разрабатываемого химерного фермента на основе линкера (GGGGS)3: А – пространственная модель с обозначением (розовыми сферами) нуклеофилов каталитические доменов конструкции (?-спирали окрашены в красные, ?-тяжи – желтые, петли – зеленые цвета); Б - электростатический потенциал поверхности молекулы конструкции с указанием положительно (синих) и отрицательно (красных) заряженных участков
Только вариант химерного фермента на основе последовательности (GGGGS)3 обладал достаточной растворимостью для возможности дальнейшей его экспрессии в бактериальной системе. Преобладание на поверхности трехмерной модели указанной конструкции фермента областей, которые имеют отрицательный электростатический потенциал (рисунок 2Б), должно, на наш взгляд, формировать достаточно стабильную гидратную оболочку, способствующую обеспечению необходимой растворимости конструкции и препятствованию её неспецифической агрегации в растворе. Это может быть важным для сохранения биологической активности получаемого фермента в составе добавки к корму для птицы.
С другой стороны, несмотря на самую низкую растворимость конструкции на основе жесткого (EAAAK)3, она, как было выявлено выше, потенциально обладая высокой структурной гибкостью, характеризуется, согласно ранее полученным данным, наиболее оптимальными физико-химическими свойствами (в частности, сравнительно высоким алифатическим индексом и термостабильностью). Тем не менее, полученные в текущем исследовании данные позволили отобрать вариант химерного фермента, содержащего линкер (GGGGS)3, в качестве приоритетного для дальнейшего, более тщательного in silico исследования.
В результате более детальной оценки первичной аминокислотной последовательности отобранной нами химерной конструкции, которая проведена с помощью сервера Protein-Sol, установлены отклонения большинства показателей от среднепопуляционных значений, характерных для растворимых белков протеома бактерии E. coli (рисунок 3).
Существенное положительное превышение средних значений (рисунок 3А) отмечали для таких аминокислот, как глицин (G) и серин (S) (выше 3,0 ед.), а также аспарагин (N), треонин (T) и тирозин (Y) (выше 2,0 ед.). Помимо этого, установлены положительные величины показателей KmR (преобладание лизина над аргинином) и aro (содержание ароматических аминокислот) отрицательные – KpR (содержание положительно заряженных остатков лизина и аргинина), DpE (содержание отрицательно заряженных остатков аспартата и глутамата) и PpN (общее количество заряженных аминокислотных остатков).
Наиболее значительный положительный вклад (выше 4 ед.) наблюдали для показателя dis (возможность к пространственной разупорядоченности). При этом, согласно профилю склонности химерного фермента к сворачиванию (рисунок 3Б), отмечали чередование положительных и отрицательных значений индекса фолдинга, которые с высокой вероятностью свидетельствуют о наличии соответственно структурированных (упорядоченных) и неструктурированных (гибких) участков [13]. Скорее всего, структура отобранной конструкции обладает определённой степенью конформационной лабильности. Это может быть связано влиянием гибкого линкера (GGGGS)3 на домены разрабатываемого химерного фермента, обеспечивающего необходимую пространственную свободу их расположения.
Рис. 3. In silico оценка структурно-функциональных и физико-химических свойств разрабатываемого химерного фермента: А – профиль отклонений аминокислотного состава конструкции от средних популяционных значений, характерных для растворимых белков протеома бактерии E. coli; Б – профиль склонности полипептидной цепи конструкции к ее сворачиванию; В - распределение электростатического заряда по аминокислотной последовательности конструкции
Нами в полипептидной цепи предложенной конструкции выявлено значительное количество участков с отрицательным зарядом (рисунок 3В), что согласуется с визуализацией электростатического потенциала его поверхности (рисунок 2Б). Полученные данные, в частности – преобладание гидрофильных (отрицательно заряженных) аминокислот над гидрофобными и потенциальное наличие неупорядоченных участков в составе разрабатываемого химерного фермента, – указывают на достаточную ее теоретическую растворимость [13].
Оценка возможности предложенной конструкции к способности образовывать агрегаты, выполненная алгоритмом Aggrescan3D, показала, что большая часть его аминокислотной последовательности характеризуется отрицательными значениями баллов (в среднем в диапазоне от -0,75 до -0,62) (рисунок 4А), отмечаемыми в виде преобладания гидрофильных участков в пространственной организации изучаемой химерной макромолекулы (рисунок 4Б).
Результаты, полученные нами в настоящем исследовании, скорее всего, свидетельствует о структурной стабильности предложенной конструкции на основе линкера (GGGGS)3 в отношении образования неспецифических белковых комплексов и ее доступности для растворителя.
Рис. 4. Оценка потенциала агрегации разрабатываемого химерного фермента: А – распределение баллов агрегационной способности по длине аминокислотной последовательности конструкции; Б – пространственная структура конструкции с картированием ее гидрофильных (синих) и гидрофобных (красных) участков, склонных к формированию неспецифических комплексов
Заключение. В результате in silico исследований показано, что включенный в состав спроектированного химерного фермента на основе ксиланазы Bacillus sp. 41M-1 и целлюлазы Hypocrea jecorina VTT-D-80133 тип линкера способен влиять на его растворимость и агрегационную способность. Несмотря на то, что у варианта фермента, содержащего последовательность (EAAAK)3, отмечали наибольшую величину радиуса гирации (42,54 A) и наименьшее собственное число (2,22e-06), только конструкция на основе линкера (GGGGS)3 обладала достаточной для возможности ее экспрессии в бактериальной системе растворимостью (значение показателя Psol составило 0,45). Дальнейшие in silico, in vitro и in vivo оценка открывают перспективы применения разрабатываемой бифункциональной гидролазы в качестве кормового фермента в промышленном птицеводстве.
Список литературы:
1. Мухаммадиев Р. С., Валиуллин Л. Р., Барышев М. Г. [и др.]. Продуктивность, иммунный статус и микробиота кишечника цыплят-бройлеров при включении в рацион пробиотиков на основе Lactiplantibacillus plantarum SG66 и/или GA24. Известия Тимирязевской сельскохозяйственной академии. 2025; (1): 182-200. DOI: 10.26897/0021-342X-2025-1-182-200.
2. Крюкова Т. В. Ферменты: польза или… только польза от применения! Аграрная наука. 2021; 344 (1): 43-46.
3. Marmelstein S., Costa I. P. A., Terra A. V. et al. Advancing efficiency sustainability in poultry farms through data envelopment analysis in a Brazilian production system. Animals (Basel). 2024; 14 (5): 726-750. DOI: 10.3390/ani14050726.
4. Феоктистова Н. В., Марданова А. М., Лутфуллин М. Т. [и др.]. Биопрепараты микробного происхождения в птицеводстве. Ученые записки Казанского университета. Серия Естественные науки. 2018; 160 (3): 395-418.
5. Liu L., Wang Z., Wei B. et al. Replacement of corn with different levels of wheat impacted the growth performance, intestinal development, and cecal microbiota of broilers. Animals (Basel). 2024; 14 (11):1536-1554. DOI: 10.3390/ani14111536.
6. Suyama M. S., Gewehr C. E. Dietary fiber in poultry nutrition: impacts on physiology, digestive metabolism and on productive performance. Trop. Anim. Health Prod. 2026; 58 (2):160-176. DOI: 10.1007/s11250-026-04970-6.
7. Nguyen X. H., Nguyen H. T., Morgan N. K. Dietary soluble non-starch polysaccharide level and xylanase supplementation influence performance, egg quality and nutrient utilization in laying hens fed wheat-based diets. Anim. Nutr. 2021; 7 (2): 512-520. DOI: 10.1016/j.aninu.2020.05.012.
8. Валиуллин Л. Р., Мухаммадиев Р. С., Мухаммадиев Р. С. [и др.]. Выделение, очистка и изучение физикохимических свойств ксиланазы штамма Bacillus subtilis 9. Достижения науки и техники АПК. 2021; 35 (10): 66-71. DOI: 10.53859/02352451_2021_35_10_66.
9. Валиуллин Л. Р., Мухаммадиев Р. С., Мухаммадиев Р. С. [и др.]. Очистка амилазы и протеазы мутантного штамма Bacillus subtilis и их характеристика. Ветеринария Кубани. 2025; (5): 25-29. DOI: 10.33861/20718020-2025-5-25-29.
10. Yao J., Ouyang B., Ni D. et al. Construction and application of a bifunctional enzyme for the simultaneous enzymatic transformation of zearalenone and deoxynivalenol. Int. J. Biol. Macromol. 2025; 322 (Pt 2): 146534. DOI: 10.1016/j.ijbiomac.2025.146534.
11. Mirdita M., Schutze K., Moriwaki Y. et al. ColabFold: making protein folding accessible to all. Nat. Methods. 2022; 19: 679-682. DOI: 10.1038/ s41592-022-01488-1.
12. Meng E. C., Goddard T. D., Pettersen E. F. et al. UCSF ChimeraX: Tools for structure building and analysis. Protein Sci. 2023; 32 (11): e4792. DOI: 10.1002/pro.4792.
13. Hebditch M., Carballo-Amador M. A., Charonis S. et al. Protein-Sol: a web tool for predicting protein solubility from sequence. Bioinformatics. 2017; 33 (19): 3098-3100. DOI: 10.1093/bioinformatics/btx345.
14. Pujols J., Iglesias V., Santos J. et al. A3D 2.0 Update for the prediction and optimization of protein solubility. Methods Mol. Biol. 2022; 2406: 65-84. DOI: 10.1007/978-1-0716-1859-2_3.
15. Lopez-Blanco J. R., Aliaga J. I., Quintana-Orti E. S. et al. iMODS: internal coordinates normal mode analysis server. Nucleic Acids Res. 2014; 42 (Web Server issue): W271-6. DOI: 10.1093/nar/gku339.
16. Tanner J. J. Empirical power laws for the radii of gyration of protein oligomers. Acta Crystallogr. D. Struct. Biol. 2016; 72 (Pt 10): 1119-1129. DOI: 10.1107/S2059798316013218.
17. Ahmed M. C., Crehuet R., Lindorff-Larsen K. Computing, analyzing, and comparing the radius of gyration and hydrodynamic radius in conformational ensembles of intrinsically disordered proteins. Methods Mol. Biol. 2020; 2141: 429-445. DOI: 10.1007/978-1-0716-0524-0_21.
Сведения об авторах:
Валиуллин Ленар Рашитович, кандидат биологических наук, старший научный сотрудник лаборатории прикладной и экспериментальной микробиологии ФГБНУ «Всероссийский научно-исследовательский институт фитопатологии»; заведующий отделения биотехнологии ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел.: 8-950-9698469; е-mail: valiullin27@mail.ru.
Мухаммадиев Ринат Салаватович, кандидат биологических наук, старший научный сотрудник отделения вирусологических и ультраструк-турных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности», 420075, г. Казань, ул. Научный городок-2; тел.: 8-987-4214127; е-mail: tanirtashir@mail.ru.
Хусаинова Гульнара Ильдусовна, кандидат биологических наук, старший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, Научный городок-2; тел.: 8-917-2627283; е-mail: gulnarai13@yandex.ru.
Каримуллина Ильсияр Габделгазизовна, кандидат биологических наук, старший научный сотрудник отделения вирусологических и ультраструктур-ных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел.: 8-904-7699225; е-mail: 89047699225@mail.ru
Сорокина Диана Анатольевна, аспирант, младший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел.: 8-927-8875729; е-mail: diana-sorokina2013@mail.ru
Романова Алиса Николаевна, младший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, г. Казань, ул. Научный городок-2; тел.: 8-902-1077198; е-mail: alisaromanova586@gmail.com.
Ямалова Гузалия Рустамовна, соискатель, научный сотрудник отделения токсикологии ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности»; 420075, Республика Татарстан, г. Казань, Научный городок-2; тел.: 8-937-5213082; е-mail: iamalova@mail.ru.
Ответственный за переписку с редакцией: Мухаммадиев Ришат Салаватович, кандидат биологических наук, старший научный сотрудник прикладной и экспериментальной микробиологии ФГБНУ «Всероссийский научно-исследовательский институт фитопатологии»; старший научный сотрудник отделения вирусологических и ультраструктурных исследований ФГБНУ «Федеральный центр токсикологической, радиационной и биологической безопасности», 420075, г. Казань, ул. Научный городок-2; тел.: 8-939-3728789; е-mail: tashir9891@mail.ru.
Заявленный вклад авторов:
Мухаммадиев Риш.С.: разработка концепции, научное руководство, написание черновика рукописи, визуализация
Валиуллин Л.Р.: административное руководство исследовательской работой
Мухаммадиев Рин.С.: написание рукописи – редактирование, проведение исследования.
Хусаинова Г.И.: курирование данных.
Каримуллина И.Г.: разработка методологии.
Сорокина Д.А.: проведение исследования, визуализация.
Романова А.Н.: валидация результатов.
Ямалова Г.Р.: формальный анализ
Конфликт интересов: авторы заявляют об отсутствии конфликта интересов.
| 2026 © Ветеринария Кубани | Разработка сайта - Интернет-Имидж | |
|---|---|---|